Cómo funcionan las trampas
La ficha de cada especie nombra un mecanismo de captura en una palabra — trampa de resorte, trampa de caída, trampa adhesiva. Esta página profundiza un nivel más: para cada género de esta guía, qué ocurre realmente a nivel mecánico, químico y fisiológico entre el primer contacto con la presa y la absorción de los nutrientes. Es la misma pregunta, respondida de diez maneras distintas — a menudo mediante soluciones evolucionadas de forma independiente para el mismo problema. Para lo que queda justo fuera de estos diez géneros, véase la página sobre Utricularia y los casos límite.
Cephalotus — la trampa de caída, reinventada
La entrada de la jarra de Cephalotus follicularis es un collar engrosado y acanalado con dientes en forma de garra que apuntan hacia dentro, alternados con glándulas de néctar; detrás hay una banda de pequeñas papilas orientadas hacia abajo que hacen casi imposible trepar de vuelta. La tapa impide la entrada de agua de lluvia — para que el líquido digestivo no se diluya — y presenta zonas alternas translúcidas y de color rojo oscuro: las "ventanas" translúcidas parecen, desde dentro, una salida, por lo que los insectos atrapados vuelan una y otra vez contra ellas y caen de nuevo. Más abajo la pared es lisa, de modo que la presa resbala; en la base, dos zonas glandulares reniformes de color rojo oscuro probablemente aportan tanto el líquido como las enzimas digestivas (esterasas, fosfatasas y proteasas) y absorben los nutrientes resultantes. Genéticamente se trata de una reinvención independiente de la trampa de caída: Cephalotus pertenece a las Oxalidales, un orden completamente distinto de las Nepenthaceae y las Sarraceniaceae, y es — junto con la bromelia Brocchinia — una de las únicas dos plantas carnívoras fuera de las Lamiales, Caryophyllales y Ericales. Los estudios genómicos muestran que estos linajes independientes reclutaron, aun así, en su mayoría las mismas familias de genes para construir una trampa de caída — como si solo hubiera un número limitado de formas de inventar la carnivoría.

Drosera — dos velocidades de pegamento
Las droseras combinan dos movimientos en escalas de tiempo muy distintas. Un único tentáculo tocado por una presa se curva hacia dentro con extrema rapidez — en una fracción de segundo en D. glanduligera, en segundos en la mayoría de las especies — impulsado por un potencial de acción que termina en la base del tentáculo y desencadena allí el movimiento. Solo después, y solo si se añade un estímulo químico, sigue la respuesta más lenta: toda la hoja se enrolla alrededor de la presa, en unos treinta minutos en D. capensis; algunas especies, como D. filiformis, no pueden doblar la hoja en absoluto. Ese movimiento lento está impulsado por la auxina, que bombea protones hacia la pared celular, baja su pH y activa la proteína de pared expansina — haciendo que las células de un lado de la hoja se estiren más rápido que las del otro, de modo que la hoja se curva. La microscopía electrónica muestra que el propio pegamento contiene una red de nanofibras y nanopartículas, con calcio, magnesio y cloro, que aumentan su resistencia y elasticidad — el mucílago puede estirarse hasta casi un millón de veces su propio volumen sin romperse. La presa suele asfixiarse en unos quince minutos al obstruirse sus espiráculos con la capa pegajosa; la hoja secreta entonces esterasa, peroxidasa, fosfatasa y proteasa para digerirla.

Dionaea — contar, cerrar, digerir
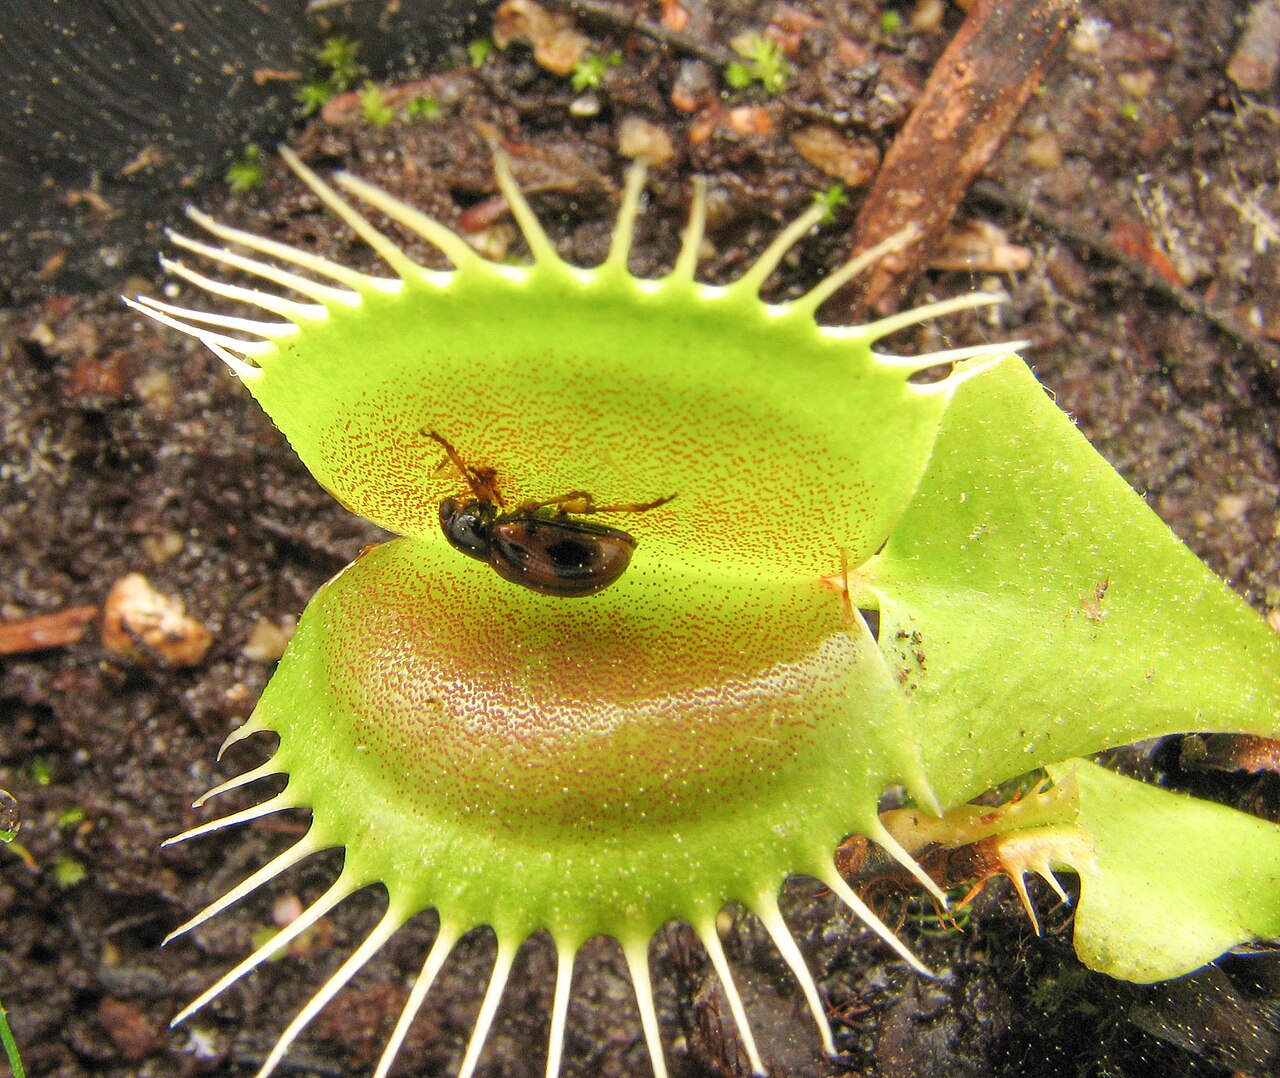
La dionea solo se cierra cuando se tocan dos de sus seis pelos sensibles en unos veinte segundos, o el mismo pelo dos veces seguidas — un doble umbral que evita que la trampa se cierre por gotas de lluvia o polvo. La planta "recuerda" el primer roce durante unos segundos, una forma de memoria a corto plazo basada en una señal eléctrica. Con el segundo estímulo, un potencial de acción con iones de calcio recorre ambos lóbulos; según la llamada teoría del crecimiento ácido, las células de las capas externas bombean entonces protones hacia su pared celular, acidificándola y aflojándola de modo que absorbe agua con rapidez. Esto hace que los dos lóbulos pasen de golpe de convexos (abiertos) a cóncavos (cerrados) — una transición mecánicamente inestable, comparable a una lentilla de contacto invertida, que Forterre y sus colegas describieron en un artículo de 2005 en Nature como un movimiento de pandeo elástico o "snap-buckling". El cierre completo dura aproximadamente una décima de segundo. Solo cuando los pelos sensibles han sido estimulados cinco veces en total, normalmente porque la presa atrapada sigue forcejeando, comienza la producción de enzimas digestivas, controlada por el ácido jasmónico — la misma hormona que las plantas comunes usan para defenderse de ser devoradas.
Nepenthes — resbalar, pegarse e inquilinos
El borde de la jarra, el peristoma, suele tener colores vivos para atraer presas, pero no ofrece ningún agarre: en cuanto la condensación forma sobre él una fina película de agua, los insectos ya no pueden caminar y se deslizan hacia dentro — un efecto que la bibliografía llama "aquaplaning". Lo que sobrevive a eso llega a una pared interior encerada y lisa como un espejo, donde sujetarse es casi imposible. En el fondo espera un líquido que no es simplemente agua: contiene biopolímeros viscoelásticos que mantienen su viscosidad "incluso muy diluidos por el agua", además de al menos 29 proteínas digestivas, entre ellas proteasas, quitinasas y proteínas relacionadas con la patogénesis y de tipo taumatina. Las naftoquinonas del líquido suprimen las bacterias y hongos que de otro modo competirían con la planta por los nutrientes. En unas pocas especies esta trampa ha crecido hasta convertirse en una relación genuina con un animal: N. bicalcarata aloja en sus zarcillos huecos a la hormiga carpintera Camponotus schmitzi, que retira las presas grandes antes de que se pudran; N. lowii recompensa a las musarañas arborícolas con un exudado azucarado en la tapa y, según un estudio de 2009, obtiene entre el 57 y el 100 por ciento de su nitrógeno foliar de sus excrementos; y la jarra de N. hemsleyana está conformada para reflejar el sonido como un espejo acústico, ajustado con precisión a la ecolocalización del murciélago lanudo que se refugia dentro durante el día y deja allí sus excrementos.

Drosophyllum — pegamento sin movimiento
A diferencia de Drosera, ninguna parte de las hojas trampa de Drosophyllum lusitanicum se mueve en absoluto: los pelos glandulares exudan constantemente una gota pegajosa y simplemente esperan. La forma enrollada hacia fuera de la hoja joven ("vernación circinada", el mismo principio que una fronda de helecho al desenrollarse) es un rasgo de crecimiento fijo, no una respuesta a la presa. Un insecto que queda pegado se enreda aún más por su propio forcejeo y muere de agotamiento o asfixia; solo entonces la hoja secreta enzimas que lo disuelven. Lo que hace realmente inusual a esta especie es su hábitat: de todas las plantas de trampa adhesiva, esta es casi la única que crece en suelo seco y bien drenado — sustratos de grava o pizarra, a menudo ricos en silicio, en claros entre matorrales y pinares, en lugar del terreno encharcado y pobre en nutrientes del que dependen la mayoría de las demás plantas carnívoras. Genéticamente, Drosophyllum está más alejado de Drosera de lo que sugiere el parecido: la evidencia molecular sitúa el género junto a las Dioncophyllaceae y las Ancistrocladaceae — la familia de Triphyophyllum, uno de los casos límite de la página de casos límite. La trampa adhesiva pasiva se inventó, por tanto, dos veces de forma independiente: aquí, y, con un mecanismo bastante distinto, en Drosera.

Darlingtonia — una ventana que no es una puerta
La cobra lily no atrae presas con un olor llamativo, sino con la forma misma de su capuchón: la parte superior curvada, como una cabeza de serpiente, presenta varias "salidas falsas" translúcidas contra las que los insectos vuelan una y otra vez buscando una salida, hasta que caen agotados. La "lengua" bífida que sobresale de la abertura se ha considerado durante mucho tiempo una plataforma de aterrizaje para las presas, pero una investigación en la que se retiró la lengua mostró que esto no afecta a la cantidad de biomasa de presa capturada — la función real de ese apéndice, por tanto, sigue sin estar clara. Lo que sí funciona con claridad: las paredes lisas y los pelos del interior del tubo hacen casi imposible trepar de vuelta, la tapa curvada (opérculo) oculta la abertura real, y los pelos orientados hacia abajo empujan a la presa más adentro de la trampa — los mismos elementos que usa Sarracenia, su pariente más cercano dentro de la familia de las sarraceniáceas. Durante mucho tiempo se asumió que Darlingtonia, como Heliamphora, dependía casi por completo de bacterias y otros habitantes del líquido de la trampa para la digestión; investigaciones más recientes muestran que la planta sí secreta al menos una enzima proteolítica propia, además de lo que aportan los microbios.

Sarracenia — cuatro zonas, quizá un narcótico
El tubo de una sarracenia se construye por zonas, cada una con su propia función. En la parte superior, el peristoma atrae a los insectos con néctar y aroma hacia un borde liso y poco fiable. Quien avanza más adentro llega a una zona de pelos diminutos orientados hacia abajo que cortan cualquier camino de vuelta, y debajo a una zona de pelos más gruesos, también orientados hacia abajo, que hacen imposible trepar de vuelta fuera del líquido digestivo. El alcaloide coniína — conocido como el veneno de la cicuta — se ha encontrado en el néctar de S. flava y, según se supo después, de otras siete especies; los extractos concentrados paralizan hormigas en el laboratorio, pero no se ha demostrado que la coniína, a las concentraciones presentes de forma natural en el néctar, narcotice realmente a los insectos. Los investigadores sospechan un doble papel, como atrayente y como narcótico, pero por ahora sigue siendo una hipótesis. La digestión propiamente dicha combina las enzimas propias de la planta, secretadas por glándulas en las zonas superiores, con las bacterias que viven en el líquido del fondo. En S. purpurea, el agua de lluvia llena el tubo, creando una completa red trófica a pequeña escala de invertebrados y bacterias en ese líquido — un sistema que los biólogos usan para estudiar, en miniatura, el ciclo de nutrientes de todo un ecosistema. S. psittacina sigue un enfoque totalmente distinto: en lugar de un tubo erguido, esta especie tiene una trampa de nasa baja, con forma de pico de loro, con pelos orientados hacia dentro que bloquean el camino de vuelta; cuando se inunda, atrapa renacuajos y peces pequeños junto con insectos.

Heliamphora — un rebosadero y enzimas prestadas
Mientras que Sarracenia, Darlingtonia y Nepenthes dejan que el líquido se acumule hasta casi desbordar la jarra, Heliamphora es el único de los tres géneros de la familia de las sarraceniáceas que tiene un pequeño orificio de drenaje, o, en un grupo de especies, una ranura lateral, que mantiene el nivel del líquido constante como el rebosadero de un lavabo. Carece por completo de tapa; en su lugar, una pequeña "cuchara de néctar" en la parte superior de la hoja atrae a los insectos hacia el borde, tras lo cual unos pelos orientados hacia abajo los empujan más adentro del tubo. El rasgo más distintivo está en la digestión: de las aproximadamente 24 especies, 23 carecen de la capacidad de producir sus propias enzimas digestivas y dependen de bacterias simbióticas para descomponer la presa. Solo H. tatei es la excepción: esta especie sí produce sus propias enzimas proteolíticas y además tiene escamas de cera que mejoran la trampa. Eso convierte a Heliamphora en un raro ejemplo, dentro de un mismo género, de cómo la carnivoría puede pasar de "que lo hagan las bacterias" a "hacerlo una misma" — exactamente las dos estrategias que también se comentan más arriba para Darlingtonia.

Byblis — pegamento que, después de todo, se mueve un poco
A primera vista, Byblis se parece mucho a Drosera y a Drosophyllum: hojas filiformes cubiertas de gotas pegajosas y brillantes. Sin embargo, el parecido es engañoso — las plantas arcoíris pertenecen al orden Lamiales, mientras que las droseras y la drosera portuguesa se sitúan en las Caryophyllales; es la tercera vez en esta página que la misma trampa adhesiva se inventa de forma independiente. La hoja lleva dos tipos de glándulas: glándulas pediceladas que aportan la gota pegajosa, y glándulas sésiles, de cinco a diez veces más numerosas, que secretan los jugos digestivos. Un estudio de 2005 demostró que Byblis digiere realmente su propia presa con enzimas de esas glándulas sésiles — así que no es una planta puramente pasiva que solo espera. Es más, posteriormente se descubrió que los tentáculos de B. liniflora sí se mueven: en cuanto detectan alimento, se pliegan hacia dentro y ponen a la presa en contacto con las glándulas digestivas — una respuesta activa que hace obsoleta la antigua clasificación como "trampa adhesiva puramente pasiva", y que, de forma totalmente independiente de Drosera, volvió a evolucionar hacia un mecanismo activo. Al igual que con Roridula (véase la página de casos límite), en cada especie de Byblis vive una chinche asesina especializada del género Setocoris, que se alimenta de las presas atrapadas junto con la planta — con la diferencia de que Byblis, a diferencia de Roridula, también digiere de forma independiente y por tanto no depende de la chinche.

Pinguicula — pegamento sin ácido jasmónico
La hoja de una pinguicula lleva dos tipos de glándulas que actúan una tras otra. Las glándulas pediceladas, con unas pocas células secretoras sobre una única célula peduncular, producen las gotas de mucílago constantemente visibles y brillantes que atraen a los insectos — probablemente porque la hoja parece entonces estar mojada. Cuando una presa queda atrapada, células de reserva en la base de esas mismas glándulas liberan mucílago adicional, mientras que el forcejeo solo activa más glándulas. Solo cuando la digestión está en marcha y se libera nitrógeno entran en acción las glándulas sésiles — tendidas planas sobre la superficie de la hoja —, que secretan ocho enzimas, entre ellas amilasa, esterasa, fosfatasa, proteasa y ribonucleasa. Algunas especies pueden además curvar ligeramente el borde de la hoja hacia dentro mediante una respuesta tigmotrópica lenta al contacto, poniendo más glándulas en contacto con la presa; no se sabe con exactitud cuánto dura esa curvatura. Destaca lo que Pinguicula precisamente no hace: a diferencia de Dionaea y Drosera, que controlan la producción de enzimas digestivas mediante ácido jasmónico, las pinguiculas no parecen usar esa hormona para ello — el mismo resultado final, alcanzado por una vía bioquímica distinta.

Al sumar los mecanismos surge un patrón: las mismas cinco soluciones — cerrarse de golpe, ahogar, pegar, de forma pasiva o activa — reaparecen una y otra vez en géneros sin relación entre sí. Solo la trampa adhesiva se ha inventado de forma independiente tres veces dentro de esta guía (Drosera, Drosophyllum, Byblis), y la trampa de caída dos veces más (Cephalotus frente a la familia de las sarraceniáceas y Nepenthes). Lo que a menudo difiere no es la trampa en sí, sino quién realiza la parte química final del trabajo: la propia planta con sus enzimas, controladas o no por ácido jasmónico, o un inquilino — una bacteria, una chinche, una musaraña arborícola — que se encarga de la digestión o la complementa.