Hoe de vallen werken
De feitenkaart van elke soort noemt een vangmechanisme in één woord — klapval, bekerval, lijmval. Deze bladzijde gaat een laag dieper: per geslacht van deze gids, wat er mechanisch, chemisch en fysiologisch gebeurt tussen het eerste contact met een prooi en de opname van de voedingsstoffen. Het is dezelfde vraag, tien keer anders beantwoord — vaak door onafhankelijk ontstane oplossingen voor hetzelfde probleem. Wie liever leest over wat er juist buiten deze tien geslachten valt, vindt dat op de bladzijde over Utricularia en de randgevallen.
Cephalotus — de bekerval als tweede uitvinding
De ingang van de kan van Cephalotus follicularis is een verdikte, geribde kraag met naar binnen wijzende, klauwvormige tanden, afgewisseld met nectarklieren; daarachter ligt een band met kleine, naar beneden gerichte papillen die terugklimmen vrijwel onmogelijk maakt. Het deksel houdt regenwater buiten — zodat de verteringsvloeistof niet verdunt — en heeft afwisselend doorschijnende en donkerrode vlakken: de doorschijnende ruiten lijken van binnenuit op een uitweg, waardoor gevangen insecten er telkens weer tegenaan vliegen en terugvallen. Verderop is de wand glad, zodat de prooi wegglijdt; onderin liggen twee niervormige, donkerrode klierzones die vermoedelijk zowel de vloeistof en de verteringsenzymen (esterasen, fosfatasen en proteasen) leveren als de voedingsstoffen opnemen. Genetisch gezien is dit een eigen, onafhankelijke uitvinding van de bekerval: Cephalotus hoort bij de Oxalidales, een heel andere orde dan de Nepenthaceae en de Sarraceniaceae, en is — samen met de bromelia Brocchinia — een van de enige twee vleesetende planten buiten de Lamiales, Caryophyllales en Ericales. Genoomonderzoek laat zien dat deze onafhankelijke lijnen toch grotendeels dezelfde families genen hebben ingezet om een bekerval te bouwen — alsof er maar een beperkt aantal manieren is om carnivorie uit te vinden.

Drosera — twee snelheden lijm
Zonnedauw combineert twee bewegingen op heel verschillende tijdschaal. De losse tentakel die een prooi raakt, buigt razendsnel naar het blad toe — bij D. glanduligera in een fractie van een seconde, bij de meeste soorten binnen enkele seconden — aangestuurd door een actiepotentiaal die bij de voet van de tentakel eindigt en daar de beweging opwekt. Pas daarna, en alleen als er ook een chemische prikkel bij komt, volgt de langzamere reactie: het hele blad krult om de prooi heen, bij D. capensis in ongeveer een half uur; sommige soorten, zoals D. filiformis, kunnen dat helemaal niet. Die trage beweging wordt aangedreven door auxine, dat protonen de celwand in pompt, de pH verlaagt en het wandeiwit expansine activeert — waardoor cellen aan één kant van het blad sneller uitrekken dan aan de andere en het blad dus buigt. De kleefstof zelf blijkt bij onderzoek met elektronenmicroscopie een netwerk van nanovezels en -deeltjes te bevatten, met calcium, magnesium en chloor erin, die de taaiheid en rekbaarheid vergroten — de mucilago kan tot bijna een miljoen keer haar eigen volume uitrekken zonder te breken. De prooi stikt doorgaans binnen een kwartier, doordat de slijmerige laag de ademopeningen verstopt; daarna scheidt het blad esterase, peroxidase, fosfatase en protease af om het over te verteren.

Dionaea — tellen, klappen, verteren
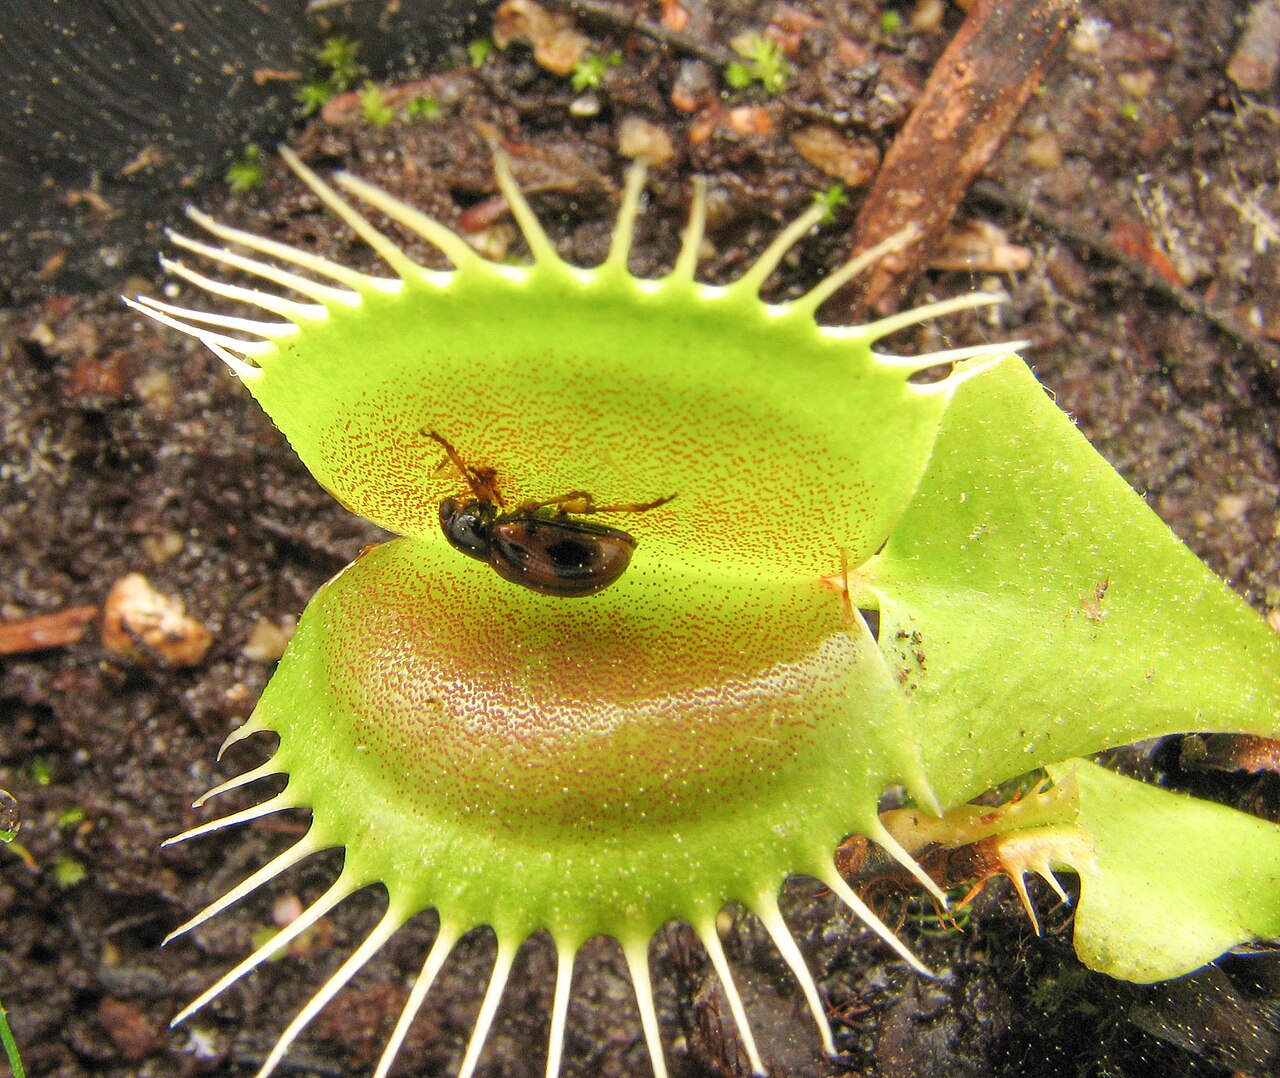
De venusvliegenval sluit pas als twee van de zes voelharen binnen ongeveer twintig seconden worden aangeraakt, of dezelfde haar twee keer snel achter elkaar — een dubbele drempel die voorkomt dat de val op regendruppels of stof dichtklapt. De plant "onthoudt" de eerste aanraking een paar seconden lang, in een vorm van kortetermijngeheugen die op een elektrisch signaal berust. Bij de tweede prikkel schiet een actiepotentiaal met calciumionen door beide bladhelften; via de zogeheten zure-groeitheorie pompen cellen in de buitenste lagen daarop protonen hun celwand in, waardoor die verzuurt, losser wordt en snel water opneemt. Dat laat de bladhelften ineens omklappen van bol (open) naar hol (dicht) — een mechanisch instabiele overgang, vergelijkbaar met een omgeklapte contactlens, die Forterre en collega's in 2005 in Nature beschreven als een elastische knik- of "snap-buckling"-beweging. Het hele dichtklappen duurt ongeveer een tiende van een seconde. Pas als de voelharen daarna in totaal vijf keer zijn geprikkeld, meestal doordat de gevangen prooi blijft spartelen, begint de aanmaak van verteringsenzymen, aangestuurd door jasmonzuur — hetzelfde hormoon waarmee gewone planten zich tegen vraatschade verdedigen.
Nepenthes — glijden, plakken en huurders
De rand van de kan, het peristoom, is vaak fel gekleurd om prooien te lokken, maar biedt geen enkele houvast: zodra condensatie er een dun waterlaagje op vormt, kunnen insecten er niet meer op lopen en glijden ze naar binnen — een effect dat in de literatuur "aquaplaning" heet. Wie dat overleeft, komt op een wasachtige, spiegelgladde binnenwand terecht waarop vasthouden vrijwel onmogelijk is. Onderin wacht een vloeistof die niet zomaar water is: ze bevat visco-elastische biopolymeren die hun kleverigheid behouden "zelfs als ze flink verdund raken door regenwater", en minstens 29 verteringseiwitten, waaronder proteasen, chitinasen en aan pathogenese gerelateerde en thaumatine-achtige eiwitten. Naftochinonen in de vloeistof onderdrukken bacteriën en schimmels die anders met de plant om de voedingsstoffen zouden concurreren. Bij een paar soorten is deze val uitgebouwd tot een echte relatie met een dier: N. bicalcarata biedt in zijn holle ranken onderdak aan de timmermansmier Camponotus schmitzi, die grote prooien uit de kan haalt voordat ze kunnen rotten; N. lowii beloont boomspitsmuizen met een suikerhoudend afscheidsel op het deksel en haalt volgens een studie uit 2009 tussen de 57 en 100 procent van zijn bladstikstof uit hun uitwerpselen; en de kan van N. hemsleyana is zo gevormd dat hij geluid weerkaatst als een akoestische spiegel, precies afgestemd op de echolocatie van de wolharige vleermuis die er overdag in slaapt en er zijn mest achterlaat.

Drosophyllum — lijm zonder beweging
In tegenstelling tot Drosera beweegt geen enkel deel van de vangbladeren van Drosophyllum lusitanicum: de klierharen scheiden voortdurend een kleverige druppel af en wachten simpelweg af. De naar buiten gekrulde vorm van het jonge blad ("circinate vernation", hetzelfde principe als een varenblad dat zich ontrolt) is een vast groeikenmerk, geen reactie op een prooi. Een insect dat blijft plakken, raakt door zijn eigen spartelen verder verstrikt en sterft van uitputting of verstikking; pas dan scheidt het blad enzymen af die het oplossen. Wat deze soort echt bijzonder maakt, is de standplaats: van alle lijmvalplanten is dit vrijwel de enige die op droge, goed doorlatende grond groeit — grind- of leisteenbodems, vaak met veel silicium, in open plekken tussen struikgewas en in dennenbos, in plaats van de drassige, voedselarme grond waar de meeste andere vleesetende planten op aangewezen zijn. Genetisch staat Drosophyllum verder van Drosera af dan de gelijkenis doet vermoeden: moleculair onderzoek plaatst het geslacht juist bij de Dioncophyllaceae en de Ancistrocladaceae — de familie van Triphyophyllum, een van de grensgevallen op de bladzijde over de randgevallen. De passieve lijmval is dus twee keer los van elkaar uitgevonden: hier en, heel anders aangedreven, bij Drosera.

Darlingtonia — een raam dat geen deur is
De cobralelie lokt geen prooien met een opvallende geur, maar met de vorm van de kap zelf: de gebogen, slangenkop-achtige bovenkant heeft meerdere doorschijnende "nepuitgangen" waar insecten steeds weer tegenaan vliegen op zoek naar een uitweg, tot ze uitgeput naar beneden vallen. De gevorkte "tong" die uit de opening steekt, wordt al lang beschouwd als landingsplek voor prooien, maar onderzoek waarbij de tong werd verwijderd, liet zien dat dit de hoeveelheid gevangen biomassa niet beïnvloedt — de werkelijke functie van dat aanhangsel staat dus nog niet vast. Wat wel duidelijk werkt: gladde wanden en haren in de kokervormige buis maken terugklimmen vrijwel onmogelijk, het gekrulde deksel (operculum) verbergt de echte opening, en naar beneden gerichte haren duwen de prooi verder de val in — dezelfde bouwstenen als bij Sarracenia, de naaste verwant binnen de trompetbekerfamilie. Lang werd aangenomen dat Darlingtonia, net als Heliamphora, voor de vertering vrijwel volledig op bacteriën en andere bewoners van de valvloeistof leunt; recenter onderzoek toont aan dat de plant wel degelijk zelf minstens één proteïnesplitsend enzym afscheidt, naast wat de microben bijdragen.

Sarracenia — vier zones, misschien een verdoving
De koker van een trompetbeker is in zones opgebouwd, elk met een eigen taak. Boven trekt het peristoom insecten met nectar en geur naar een gladde, onbetrouwbare rand. Wie verder naar binnen loopt, komt in een zone met piepkleine, naar beneden gerichte haren die elke terugweg afsnijden, en daaronder in een zone met grovere, eveneens naar beneden wijzende haren die terugklimmen uit de verteringsvloeistof onmogelijk maken. In de nectar van S. flava — en, zo bleek later, van zeven andere soorten — is het alkaloïde coniine aangetroffen, bekend als gif van de gevlekte scheerling; geconcentreerde extracten verlammen mieren in het laboratorium, maar het is niet aangetoond dat coniine bij de concentraties die van nature in de nectar voorkomen ook insecten daadwerkelijk verdooft. Onderzoekers vermoeden een dubbele rol, als lokstof én als narcoticum, maar dat blijft voorlopig een hypothese. De eigenlijke vertering combineert eigen enzymen, afgescheiden door klieren in de bovenste zones, met de bacteriën die in de vloeistof onderin leven. Bij S. purpurea vult regenwater de koker en ontstaat er een compleet, kleinschalig voedselweb van ongewervelden en bacteriën in die vloeistof — een systeem waar biologen de mineraalkringloop van een heel ecosysteem in het klein bestuderen. S. psittacina gooit het over een andere boeg: in plaats van een rechte koker heeft deze soort een liggende, papegaaienbek-achtige fuikval, met naar binnen gerichte haren die de weg terug versperren; bij overstroming vangt hij zo naast insecten ook kikkervisjes en kleine visjes.

Heliamphora — een overloop en geleende enzymen
Waar Sarracenia, Darlingtonia en Nepenthes vloeistof laten oplopen tot de kan overstroomt, heeft Heliamphora als enige van de drie geslachten binnen de trompetbekerfamilie een klein drainagegaatje of, bij één groep soorten, een spleet in de zijkant, die het vloeistofniveau als een overloop van een wastafel constant houdt. Een deksel ontbreekt volledig; in plaats daarvan lokt een klein "nectarlepeltje" boven aan het blad insecten naar de rand, waarna naar beneden gerichte haren ze verder de koker in dwingen. Het meest onderscheidende kenmerk zit in de vertering: van de ongeveer 24 soorten missen er 23 het vermogen om zelf verteringsenzymen te maken en zijn ze afhankelijk van symbiotische bacteriën die de prooi afbreken. Alleen H. tatei vormt de uitzondering: die soort produceert wél eigen, proteïnesplitsende enzymen en heeft bovendien wasschubben die de val verbeteren. Dat maakt Heliamphora een zeldzaam voorbeeld binnen één geslacht van hoe carnivorie zich kan verplaatsen van "laat de bacteriën het werk doen" naar "doe het zelf" — precies de twee strategieën die bij Darlingtonia hierboven ook ter sprake komen.

Byblis — lijm die toch een beetje beweegt
Op het oog lijkt Byblis sprekend op Drosera en Drosophyllum: draadvormige bladeren vol glinsterende kleefdruppels. De verwantschap is echter schijn — regenboogplanten horen bij de orde Lamiales, terwijl zonnedauw en de Portugese zonnedauw bij de Caryophyllales staan; het is voor de derde keer op deze bladzijde dezelfde lijmval die onafhankelijk is uitgevonden. Het blad draagt twee soorten klieren: gesteelde klieren die de kleverige druppel leveren, en zittende klieren, vijf tot tien keer zo talrijk, die de verteringssappen afscheiden. Onderzoek uit 2005 toonde aan dat Byblis zijn prooien werkelijk zelf verteert met enzymen uit die zittende klieren — dit is dus geen zuiver passieve wachtplant. Sterker nog, later bleek dat de tentakels van B. liniflora wél degelijk bewegen: zodra ze voedsel detecteren, klappen ze in en brengen ze de prooi in contact met de verteringsklieren — een actieve reactie die de oudere indeling als "zuiver passieve lijmval" achterhaald maakt, en die, los van Drosera, opnieuw naar een actief mechanisme evolueerde. Net als bij Roridula (zie de bladzijde over de randgevallen) leeft er op elke Byblis-soort een gespecialiseerde roofwants uit het geslacht Setocoris, die meeëet van de gevangen prooien — met dit verschil dat Byblis, anders dan Roridula, ook zelfstandig verteert en dus niet van de wants afhankelijk is.

Pinguicula — lijm zonder jasmonzuur
Het blad van een vetblad draagt twee soorten klieren die na elkaar in werking treden. Gesteelde klieren, met een paar afscheidende cellen op een enkele stengelcel, produceren de voortdurend zichtbare, glimmende slijmdruppels die insecten aantrekken — vermoedelijk omdat het blad er zo uitziet alsof er water op staat. Raakt een prooi verstrikt, dan geven reservecellen aan de voet van diezelfde klieren extra mucilago af, terwijl het spartelen alleen maar meer klieren activeert. Pas wanneer de vertering eenmaal op gang komt en stikstof vrijkomt, springen de zittende klieren — plat tegen het bladoppervlak — in actie en scheiden ze acht enzymen af: amylase, esterase, fosfatase, protease en ribonuclease onder meer. Sommige soorten kunnen de bladrand bovendien licht naar binnen krullen door een langzame, thigmotrope reactie op aanraking, waardoor meer klieren met de prooi in contact komen; hoe lang die krul precies duurt, is niet vastgelegd. Opvallend is wat Pinguicula juist niet doet: in tegenstelling tot Dionaea en Drosera, die de aanmaak van verteringsenzymen via jasmonzuur aansturen, lijkt vetblad dat hormoon daar niet voor te gebruiken — hetzelfde eindresultaat, bereikt via een ander biochemisch pad.

Tel de mechanismen bij elkaar op en er ontstaat een patroon: dezelfde vijf oplossingen — klappen, verdrinken, plakken, passief of actief — duiken telkens opnieuw op in geslachten die niet met elkaar verwant zijn. De lijmval alleen al is in deze gids drie keer los van elkaar uitgevonden (Drosera, Drosophyllum, Byblis), en de bekerval nog eens twee keer (Cephalotus tegenover de trompetbekerfamilie en Nepenthes). Wat verschilt, is vaak niet de val zelf maar wie het laatste, chemische deel van het werk doet: de plant met eigen enzymen, aangestuurd door jasmonzuur of juist niet, of een huurder — een bacterie, een wants, een boomspitsmuis — die de vertering overneemt of aanvult.